这篇综述于 2014 年 8 月 4 日在线发表在 Anti-Cancer Agents in Medicinal Chemistry 杂志上,Oronsky BT 等肿瘤学家系统性地介绍了肿瘤细胞能量代谢的特点,并详细列举了肿瘤能量代谢通路中有哪些潜在的药物作用靶点。此外,他们还分析了抗肿瘤细胞能量代谢策略是否可行,相关的抗肿瘤药物研究进展又如何。
摘要
早在 1920 年,德国生物化学家 Otto Warburg 就发现了肿瘤细胞代谢的特点 - 高水平的糖酵解作用,并据此拿下了第二个诺贝尔奖。Warburg 认为,肿瘤发生的最初原因是线粒体呼吸功能障碍,为了维持细胞生存和满足大分子合成的需要,细胞选择激活另一种能量代谢方式 - 有氧糖酵解 (aerobic glycolysis)。
肿瘤细胞用有氧糖酵解替代正常组织细胞的氧化磷酸化 (Oxidative Phosphorylation,OXPHOS)。这些不能经由线粒体途径获得 ATP 的肿瘤细胞,只能进行代谢重组,以维持细胞内的 ATP 和 NADH 水平正常。众所周知,ATP 和 NADH 是生物大分子合成、生物膜整合、离子浓度维持和 DNA 合成所必需的。
“跟着钱走”是一个发现和破获犯罪活动的久经考验的方法,因为非法所得的钱款需要销赃。同样,可以将这种方法沿用到肿瘤研究中,追踪和破坏细胞的能量通货 ATP 和氧化还原通货 NADH。因为肿瘤需要大量的 ATP 和 NADH,它们不仅是肿瘤细胞转移和增殖所必需的,还是维持肿瘤细胞生存所必需的。
目前,有四种可以有效降低肿瘤细胞 ATP 水平的策略:(1)使用靶向能量代谢的小分子能量限制模拟药物 (ERMAs),(2) 使用可以降低能量“补给”的自噬抑制剂,(3)加速细胞内 ATP 消耗以增大能量缺口,(4)控制食源性能量物质的摄入以切断能量供给。
1. 前言
“肿瘤后来居上,已经成为危害人类健康的第二大疾病。然而,因果相连,肿瘤发生有且仅有一个最初原因。简而言之,肿瘤发病的最初原因是正常细胞的氧化呼吸被糖类物质发酵所取代。正常情况下,所有人体细胞均是专性好氧细胞,而部分肿瘤细胞却是厌氧细胞。”
1966 年诺贝尔奖会议上,Otto Warburg 将其理论简述为“肿瘤是一种代谢疾病”。如今的抗肿瘤药物研究已经被“个体化治疗”主导,旨在寻找可以抑制肿瘤细胞增殖相关特异性分子活性的药物。随着人类染色体测序工作和特定肿瘤遗传易感基因鉴定工作的开展,已经发现了多种靶向特定突变基因或基因产物的药物。
由于特定基因簇或基因突变并不是所有类型肿瘤发生所必需的,所以有必要寻找特定的生物标记,以便确定哪些患者可以在治疗中获益。然而,如果恶性肿瘤正如 Warburg 所描述的那样“肿瘤是线粒体功能障碍的结果”,那么 ATP 合成受阻会造成发酵的补偿性增加,因此肿瘤就是一种由能量失衡触发的疾病。
这种从代谢方面的看法与当前的主流观点相悖,主流观点认为多基因突变是不同类型疾病发生的基础。按照 Warburg 的思路,基因突变只是肿瘤发生“犯罪现场”的“旁观者”,反而“真正的罪犯”发酵却逃脱法网,但是 Warburg 并没有验证这种分析方式的真实性。
简而言之,不可逆的线粒体功能障碍触发了一系列的基因突变连锁反应,这在很大程度上促进了“第二个最佳”ATP 产生方式 - 糖酵解的进行。的确,通常将基因突变当做肿瘤发生的最初原因,不过基因突变可能是代谢和能量失衡的结果或补偿性反应。
延伸开来,尽管 Warburg 没有直说 HIF1-α、c-myc、ras、IGF-1 和 PI3K/Akt/mTOR 基因突变或过表达直接或间接地促进了糖酵解代谢,但是基因突变可能在肿瘤发生中扮演了 “第二大角色”而非“内奸角色”。因为 HIF1-α、c-myc、ras、IGF-1 和 PI3K/Akt/mTOR 等因子在糖酵解代谢中发挥了重要作用。
在缺氧环境下,肿瘤细胞选择开启糖酵解代谢并上调促血管新生因子的表达,最终促进肿瘤的发生和转移。很明显,一个基于 ATP 来源而非氧化磷酸化的恶性循环最终形成了。有趣的是,有些肿瘤处于常氧状态仍可能选择糖酵解代谢以便获得更多的能量通货 ATP,这在某种程度上触发一种恶性肿瘤表型。
从治疗层面出发,曾经那个所谓的靶向抑制剂伊马替尼 (imatinib) 在临床应用中却偏离了它原先设定的靶点葡萄糖转运体 -1(GLUT-1)和葡萄糖 -6- 磷酸脱氢酶(G6PD),于是也失去了干扰细胞能量代谢的能力,可见个体化基因医学的发展并没有提供有效的抗肿瘤策略。
此外,Seyfried 等多位科学家认为任何一个“反向理论”,例如 Warburg 效应,一旦偏离了当前主流研究的基因 - 中心框架,不可避免地沦为边缘科学。靶向肿瘤能量代谢的抗肿瘤药物研发过程已经彻彻底底地演变为分子水平的“猎巫行动”。
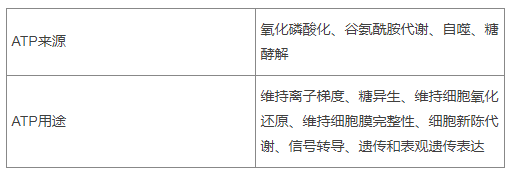
图 1. ATP 的来源和用途
肿瘤就像一条九头蛇,某条信号通路一旦受到抑制,新的替代性信号通路就会出现。只要细胞内的能量充足,新的通路就可能激活,哪怕是一条“性价比极低”的通路。按照逻辑极端方式分析,个体化用药类似于一种基因药理学领域的“打地鼠”游戏,一个致瘤基因突变受到抑制,另一个致瘤基因就“蹦出来了”。
这里有个前提,个体化用药策略的理论基础是“基因突变是肿瘤发生过程的核心”。从另一个逻辑极端分析,HIF1-α、c-myc、ras、IGF-1 和 PI3K/Akt/mTOR 基因的过表达或功能异常可能是细胞能量产生的必需分子,这表明基因突变可能是肿瘤发生的结果而非原因。
正如执法机关追踪黑社会犯罪和恐怖组织活动资金的来源一样,科学家应该追踪肿瘤细胞能量通货 ATP 的来源,因为肿瘤细胞的“资金来源”似乎只有一个不稳定的单一途径。这条途径容易受到其他需求冲击或供给冲击的影响。
过度的 ATP 缺乏会导致 Na+-K+-ATP 酶依赖性离子泵功能障碍,破坏细胞内离子稳态平衡,最终诱发细胞水肿和死亡。18F-FDG PET/CT 扫描结果显示肿瘤细胞摄入大量的葡萄糖,这在一定程度上验证这一观点:肿瘤细胞过度依赖葡萄糖和糖酵解代谢。
图 2. 细胞代谢对比:正常细胞依赖氧化磷酸化,肿瘤细胞依赖糖酵解和谷氨酰胺代谢
除了对糖酵解的依赖外,肿瘤细胞也需要谷氨酰胺。和葡萄糖一样,谷氨酰胺也是一种回补物质,它可以为 Krebs 循环 (Krebs Cycle,三羧酸循环) 提供草酰乙酸等能源性前体物质。
由于糖酵解和谷氨酰胺代谢 (glutaminolysis) 提升了细胞内的碳通量,造成 Krebs 循环前体中间物的聚集,从而激活另一条代谢通路磷酸戊糖途径(Pentose Phosphate Pathway)。
磷酸戊糖途径可以产生大量 NADPH,这可以还原谷胱甘肽的,从而缓解细胞内的氧化应激水平。此外,磷酸戊糖途径可以产生大量核糖 -5- 磷酸,后者是核酸生物合成必需的构件分子。
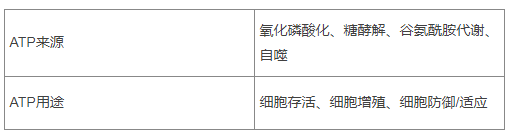
图 3. 肿瘤细胞的 ATP 和能量来源
面对化疗和放疗所带来的遗传毒性应激,肿瘤需要适应这种环境并开启自我防御机制,其中包括药物外排、DNA 损伤修复、生存相关基因表达上调、抗凋亡和胞内存活信号通路激活,这一系列生命活动均需要大量的持续的 ATP 供给。
上述任何一种适应 / 防御策略均需要与 ATP 产生相关通路交联,例如有氧糖酵解 / 谷氨酰胺代谢 / 磷酸戊糖途径。然而,这些代谢通路的产能效率远低于氧化磷酸化。如果 ATP 需求大于了供给,就会出现一种“能量赤字”,此时肿瘤会有三种应对策略:提升 ATP 产量、通过自噬 “补给”ATP 产生或降低 ATP 消耗。
随着 ATP 供给的减少,多种细胞活动受到限制,例如由 ATP 依赖性多药耐药泵介导的药物外排、p53 等肿瘤抑制基因的表观遗传沉默。Chen 等研究发现,能量限制模拟剂 (2-deoxyglucose 和 3-bromopryuvate) 可以重新激活沉默的 KLF6 肿瘤抑制基因。
Zhou 等研究发现,药物耐受性肿瘤细胞在 ATP 耗尽的情况下化疗敏感性升高,而药物敏感性肿瘤细胞在外源 ATP 补给的请款下化疗耐药性升高。相比正常组织细胞,肿瘤细胞需要更多的 ATP,但是肿瘤细胞在能量来源切换方面的灵活性很差。因此,通过抑制糖酵解降低 ATP 水平可以选择性杀死肿瘤细胞
这就造成了“生存重于生长”,以及获得性耐受。这种策略与 Warburg 效应一样,成为了肿瘤治疗的统一标准,也是肿瘤治疗策略转变的基础和理由。然而,肿瘤治疗策略研究不应该仅仅局限于代谢本身,而应该从总的 ATP 和 NADH 产生角度开展。
并非一种达尔文优势,肿瘤对发酵的依赖可能仅是能量供给不足情况之下的无奈之举,相比正常组织,这是一种竞争性劣势。因此,可以将肿瘤的这个缺点应用于治疗层面,特别是用于提升化疗敏感性。
先前的肿瘤化疗策略往往因为化疗敏感性低而失败,如今有了可以升高肿瘤化疗敏感性的方法,肿瘤治疗也就变成了慢性的可治愈性的疾病,而且可以在锝 99m (99mTc) - 甲氧基异丁基异腈 (sestamibi) 扫描仪下成像。
图 4. 肿瘤细胞的能量产生过程和潜在抑制靶点
甲氧基异丁基异腈是 ATP 依赖性 p- 糖蛋白泵 (Pgp,由 MDR-1 基因编码) 的底物,这种放射性核素显像剂可以检测 Pgp 的抑制情况,从而反映肿瘤相对于基线水平的化疗敏感性。按照这种显像方法,“跟着 ATP 走”的任务就可以顺利完成(如图 4. 所示)。
2. 葡萄糖代谢
2.1 葡萄糖转运体抑制剂
图 5. 常用的葡萄糖转运抑制剂
研究发现,ATP 过量表达与肿瘤的恶性程度、侵袭性和不良预后密切相关。我们列举了多种 GLUT-1 抑制剂,例如不可逆抑制剂 (WZB117 和 Phloretin 根皮素)、diclofenac(双氯芬酸)、apigegnin、fasentin、STF-31、以及临床获批药物 ritonavir(利托那韦),如图 5. 所示。
WZB117 和 Phloretin 是 GLUT1 的不可逆性抑制剂,可以显著降低葡萄糖的摄入量和细胞内的 ATP 水平,从而抑制糖酵解和细胞生长。补给外源性 ATP 可以缓解肿瘤细胞的 WZB117- 诱导性细胞毒性,这表明 WZB117 等 GLUT 抑制剂通过降低细胞内 ATP 水平抑制肿瘤细胞生长。
先前有人推测 apigenin 可能通过细胞周期阻滞来发挥抗肿瘤活性,但是最近研究发现 apigenin 可以显著抑制 GLUT-1 的表达,从而降低人类胰腺癌细胞的葡萄糖摄入。查阅临床试验官方网站可以发现,有一项旨在研究 apigenin 对结直肠癌复发影响的临床试验 (NCT00609310),不过该项试验尚未开展。
流行病学研究发现,抗 HIV“鸡尾酒”可以显著降低某些肿瘤的发病率,HIV 蛋白酶抑制剂具有抗肿瘤活性?研究发现,Ritonavir 可以诱导多发性骨髓瘤细胞 (McBrayer) 和卵巢癌细胞 (Kumar) 凋亡。卵巢癌组织中的葡萄糖转运体高水平表达 (GLUT 1 和 GLUT 3) 与不良预后密切相关。
尽管 Ritonavir 对卵巢癌细胞的凋亡诱导作用可能与 PI3K/Akt 通路受抑制相关,但是有证据表明 Ritonavir 可以抑制胰岛素依赖型 GLUT4 活性。多发性骨髓瘤细胞研究结果表明,GLUT8 和 GLUT11 是细胞增殖和存活所必需的,GLUT4 是细胞葡萄糖代谢 (ATP 产生) 所必需的。
尽管 fasentin 自身不能诱导细胞死亡,但是它为寻找高效非天然产物葡萄糖转运体抑制剂起了个好头,例如 STF-31 就具有合成致死活性。
2.2 葡萄糖转运体 -1 与肾癌
肾细胞癌是成年人最常见的肾脏癌症,约占 90-95%。肾细胞癌细胞对化疗、放疗和免疫疗法的耐药性很强。最近,新型靶向治疗药物已经取得了突破性进展,例如舒尼替尼 (Sutent) 和索拉非尼 (Nexavar)。
然而,低剂量 GLUT 抑制剂可以通过降低细胞内 ATP 水平和下调 MDR 转运体表达水平升高细胞对化疗药物的敏感性,但不会产生系统性毒性。因此,在低剂量服药情况下可以将 GLUT 抑制剂和细胞毒性药物联合使用,用来预防和治疗化疗耐药性。
2.3 己糖激酶抑制剂
葡萄糖一旦跨过细胞膜进入细胞质,就会发生磷酸化作用,形成葡萄糖 -6- 磷酸 (G6P)。这是糖酵解的第一个关键步骤,由同工酶己糖激酶(hexokinase) 催化完成。己糖激酶通过磷酸化将非离子化葡萄糖转化为葡萄糖 -6- 磷酸,葡萄糖 -6- 磷酸不是葡萄糖转运体的底物,所以葡萄糖就被困在细胞中了。
图 6. 己糖激酶抑制剂
然而,氯尼达明用药与化疗联合进行时治疗效果较好。例如,氯尼达明与表柔比星 (epirubicin) 联合用药可以缓解乳腺癌对表柔比星的耐药性。氯尼达明同样可以提高卵巢癌和肺癌的化疗敏感性,结果虽然喜人但是并不严谨,这表明仍需开展进一步深入的研究。
最近,氯尼达明已经用于前列腺良性增生治疗,但是治疗过程中出现了药物相关肝脏毒性,相关治疗研究工作因此被叫停。检索可以发现,目前并没有正在开展的氯尼达明临床试验。然而,大家对氯尼达明的兴趣并没有消减,目前正在试图通过改变剂型以降低其器官毒性。
2- 脱氧 -D- 葡萄糖 (2-DG) 和 3- 溴丙酮酸 (3-BP) 是己糖激酶 -II 的小分子抑制剂,可以通过降低细胞内 ATP 水平升高细胞对化疗药物的敏感性。2- 脱氧 -D- 葡萄糖是一种葡萄糖类似物,可以进入细胞并通过磷酸化作用形成 2-DG-P。
体内研究发现,2- 脱氧 -D- 葡萄糖单独使用时治疗效果十分有限,因为内源性葡萄糖会与其竞争己糖激酶的活性位点。不过,2- 脱氧 -D- 葡萄糖与 adriamycin 和 paclitaxel 联合使用时,它可以显著提升后者的抗肿瘤活性,其作用机制可能与降低细胞内 ATP 水平和抑制多药耐药泵相关,因为药物外排需要消耗大量 ATP。
研究发现,2- 脱氧 -D- 葡萄糖可以提升曲妥单抗耐药性细胞对曲妥单抗的敏感性,这表明联合用药可能是一种有效的乳腺癌治疗策略。2- 脱氧 -D- 葡萄糖目前已经进入一期临床试验,它的耐受性很好且毒性较小。
3- 溴丙酮酸 (3-BP) 是丙酮酸的类似物,是己糖激酶和 3- 甘油醛磷酸脱氢酶的抑制剂,这两种酶在糖酵解中发挥了重要作用。临床前研究发现,经肝动脉灌注给药时,3-BrPA 对肝内和肝外肿瘤有很好的治疗效果,而且没有明显的毒性。
Cardaci 等研究发现,3-BP 可以通过抑制谷氨酰胺代谢发挥毒性作用,谷氨酰胺代谢是肿瘤细胞的另一个非线粒体性 ATP 能量来源。尽管谷氨酰胺可以替代肿瘤细胞的葡萄糖,但是在谷氨酰胺不存在的情况下,3-BP 在体外仍有很强的的细胞毒性。
2.4 丙酮酸激酶 M2(PKM2) 抑制
在糖酵解的倒数第二由丙酮酸激酶 (pyruvate kinase) 催化完成,磷酸烯醇丙酮酸 (PEP) 转化为丙酮酸。丙酮酸激酶有四个亚型:L、R、M1 和 M2,其中 M2 是肿瘤细胞丙酮酸激酶的主要亚型。有趣的是,相比其他亚型丙酮酸激酶,PKM2(丙酮酸激酶 M2)的活性很低,这会造成糖酵解上游中间产物的积累。
这些中间产物可以经磷酸戊糖途径转化为核糖 -5- 磷酸等大分子合成的底物。尽管 PKM2 抑制会抑制肿瘤的发展,但是 PKM2 催化磷酸烯醇丙酮酸生成丙酮酸是 ATP 产生的关键步骤,是能量稳态维持必不可少的。
图 7. 丙酮酸激酶 M2(PKM2) 抑制剂
紫草素 (Shikonin)(图 7.) 是一种具有抗肿瘤活性中药萘醌衍生物。紫草素通过产生活性氧 (ROS) 抑制肿瘤细胞 PKM2 的表达,具体机制可能与 358 位胱氨酸残基氧化相关。紫草素治疗膀胱癌的研究已经进入临床二期阶段,但是迄今为止尚没有数据报告。
因为相比正常组织,在肿瘤细胞中 M2 亚型丙酮酸激酶更为常见,所以 PKM2 已经成为药物治疗的潜在靶点。
理论上,高效的 PKM2 抑制剂可以完全抑制糖酵解代谢和 ATP 产生。不过,这些选择性不强的 PKM2 抑制剂可能对其他亚型的丙酮酸激酶有很好的靶向性,或者可以与其他细胞毒性药物联合使用。
紫草素及其类似物 (例如 alkannin 紫草红) 是一种天然染料和食品添加剂,在中国中药领域已经使用了很多年。研究发现,紫草素和紫草红均能有效抑制 PKM2,但对 PKM1 或丙酮酸激酶 -L(PKL)没有抑制作用,从而限制糖酵解和 ATP 的产生。这两种分子药物对人类皮肤癌细胞有化学预防作用。但是,目前在美国并没有关于紫草素和紫草红的临床试验。
3. 磷酸戊糖途径
3.1 葡萄糖 -6- 磷酸脱氢酶抑制剂
葡萄糖 -6- 磷酸脱氢酶 (G6PD) 是肿瘤细胞内主要的抗氧化酶,它可以维持谷胱甘肽 (GSH) 水平以免细胞遭受 ROS 损伤。
图 8. 葡萄糖 -6- 磷酸脱氢酶抑制剂
因此,葡萄糖 -6- 磷酸脱氢酶抑制可能会产生灾难性影响,ROS 水平失控,从而促进细胞死亡。尽管早在 1960 年有报道称类固醇可以抑制葡萄糖 -6- 磷酸脱氢酶,然而处于抗肿瘤研究中的葡萄糖 -6- 磷酸脱氢酶抑制剂的数量并不是很多。
随着葡萄糖 -6- 磷酸脱氢酶在抗肿瘤治疗中的重要性日益升高,研究工作的重点已经转移到如何寻找更加有效的 DHEA 类似物上。肿瘤细胞的多药耐药性 (MDR) 形成与药物外排泵的激活相关。
RRx-001 (如图 8. 所示) 可以抑制组蛋白去乙酰化酶 (HDACs) 和 DNA 甲基转移酶活性,是一类结构新颖的抗肿瘤化合物,目前已经进入临床实验一期阶段。RRx-001 是一种亲电体,可以与谷胱甘肽和脱氧血红蛋白的亲核硫醇基团结合。
RRx-001 是一种强有力的和选择性很高的肿瘤细胞葡萄糖 -6- 磷酸脱氢酶抑制剂,在 RRx-001 所产生的氧化迸发情况下肿瘤细胞敏感性更高。同样,RRx-001 也可以通过活性氧抑制丙酮酸激酶 M2 的活性。
这个研究结果可能与先前的假设“化疗耐药性是不可逆的”相悖,恢复敏感性 (resensitization) 可能是一种新的癌症治疗方法。
4. 谷氨酰胺代谢
4.1 谷氨酰胺转运体
肿瘤细胞对两种营养物质特别上瘾,它们分别是葡萄糖和谷氨酰胺。谷氨酰胺是人体含量最丰富的循环性氨基酸,谷氨酰胺经过代谢可以转化为α- 酮戊二酸,α- 酮戊二酸是 Krebs 循环的中间产物。Krebs 循环不仅细胞提供 ATP,还为大分子合成提供前体物质,例如为糖异生提供苹果酸、为氧化磷酸化提供 NADH、为亚铁血红素合成提供琥珀酰 CoA。
它莫西芬 (Tamoxifen) 和雷洛昔芬 (Raloxifene)(如图 9. 所示) 均可以通过抑制谷氨酰胺转运体 (ASCT2) 阻断谷氨酰胺的细胞摄入,从而降低细胞内谷胱甘肽水平,产生一定的细胞毒性。
5. 自噬抑制
在营养物质匮乏的条件下,肿瘤细胞动用和调配一些生物大分子用于代谢反应。自噬是一种维持 ATP 正常水平的自我补给方式,从而将能量消耗降到最低水平。
图 10. 自噬抑制剂
临床研究最彻底的自噬抑制剂是抗疟疾化合物,即氯喹 (chloroquine,CQ) 和羟氯喹(hydroxychloroquine,HCQ)(如 10. 所示),它们可以抑制溶酶体蛋白酶活性。像其他 ERMAs 一样,氯喹可以恢复 Her2- 阳性乳腺癌细胞对曲妥单抗的敏感性。
研究发现,芹黄素还可以诱导细胞自噬。有趣的是,相比芹黄素单独处理,芹黄素和自噬抑制剂 3- 甲基腺嘌呤 (3-methyladenine) 联合处理可以显著提高肿瘤细胞凋亡水平,这表明芹黄素和自噬抑制剂联合用药可能是一种很有前途的抗肿瘤治疗策略。
6. 加大细胞 ATP 消耗量
为了应对放疗和化疗等环境“冲击”等,肿瘤细胞必须按比例增加其 ATP 产生量,以满足复杂表型变化的能量需求,但是这会大大降低其生存能力。
维拉帕米是 P- 糖蛋白泵的一种非化疗药物性底物,可以激活 ATP 酶活性,这会消耗大量的能量。当浓度在毒性水平以下时,维拉帕米可以恢复 P- 糖蛋白过量表达细胞的多药耐药泵表型。Gatenby 等认为这种“减少供给和增加需求”的治疗策略在理论上可以产生复敏效果,从而提高荷瘤小鼠的存活率。
7. 控制食源性能量
肿瘤患者控制食源性能量的基础是降低葡萄糖摄入量,诱发产生一种酮症状态 (ketotic state)。在能量限制或强烈体育运动的情况下,脂肪酸代谢会产生酮类物质 (ketones),后者会转化为乙酰 CoA 并进入三羧酸循环和电子传递链。
正常细胞可以利用酮类物质,但是肿瘤细胞由于氧化磷酸化功能障碍而不能利用酮类物质。因此,控制食源性能量会将肿瘤置于进退两难的境地:(1) 糖酵解作用下降;(2) 饥饿的肿瘤组织又不能用酮体物质替代葡萄糖。
到目前为止,还没有开展一项关于食源性能量限制的随机临床试验。不过,有两个案例报告却给大家带来了令人鼓舞的结果。1995 年 Nebeling 等报道,接受长期生酮治疗 (即饮食大量高脂肪食物) 晚期恶性星形细胞瘤儿童患者的无病进展期为 12 个月。
考虑到恶病体质肿瘤患者的体重降低情况,限制热量饮食、低血糖饮食或生酮饮食疗法似乎很难开展。然而,检索临床试验官方网站可以发现,一项名为“复发胶质母细胞瘤患者化疗期间限制热量饮食、生酮饮食和瞬态禁食 (ERGO2)”临床随机实验正在开展,至少 4 项涉及不同类型肿瘤患者生酮饮食研究正处于 1 期临床阶段。
在不久的将来,应该有更多的数据可以证明这种食源性能量控制疗法的有效性,或单独使用,或与其他疗法联合进行。
8. 成像应用
有两种生物标记物可以标示肿瘤的 ATP 产生情况,它们分别是 2-18F-2- 脱氧 -D- 葡萄糖 (2-[18F] fluoro-2-deoxy-d-glucose,FDG) 和 Tc 锝 - 甲氧基异丁基异睛(Tc-Sestamibi,Tc-MIBI)。PET 扫描早已成为恶性肿瘤肿瘤筛查的主要手段。
9. 结论
不管是犯罪组织还是恐怖分子,它们都需要依赖资金支持来开展犯罪行为,资金来源正是执法机关打击和瓦解这些犯罪组织的切入点。
肿瘤似乎受到了能源“诅咒”,结果使得肿瘤代谢十分脆弱不堪。要想具有持久的获得性耐药性,就必须匹配相应的供给和需求环境。
和其他疾病一样,肿瘤治疗也是基于个体基因突变差异进行的。不过,在开展个体化治疗时,我们不能忽略能量限制这个治疗思路。按照目的论的思维方式,肿瘤细胞的存在理由是生存,这需要快速的大量的 ATP 供给以满足细胞能量需求、生物合成需要、以及维护细胞内的氧化还原状态。
经典的致瘤信号通路一般和代谢通路交联,例如 PI3K/AKT 和 mTOR 通路,这直接或间接地促进了生物合成和细胞增殖,最终产生了一个新概念:信号通路抑制和能量限制联合治疗策略。
微观经济学认为,如果特定资源的总需求超过供应,短缺问题接踵而至,如果短缺是普遍性的和慢性的,那么连带后果会在整个经济体系蔓延。同样,如果细胞内的 ATP 水平由于药物作用或食物控制而短缺不足,所产生的能量压力迫使肿瘤细胞将 ATP 重新分配到最需要的地方,例如生存。
这个重新分配会导致其他能量密集型的细胞活动受阻,例如 ATP 驱动型药物外排泵或肿瘤抑制基因的表观遗传沉默。
赋予先前那些耐药性肿瘤细胞新的化疗敏感性,这可能会给肿瘤治疗带来几何形的变化,从线性连续疗法到环线放疗 / 化疗重新介入的变化,这可能会显著改善肿瘤患者的总体存活率,将癌症变成一种普通的慢性病。
理想情况下,联合治疗和非重叠疗法可能包括用药物抑制糖酵解、磷酸戊糖途径、谷氨酰胺代谢、自噬和非化疗策略 (如维拉帕米,可以加剧能量密集型 MDR- 介导 ATP 的周转),上述多种策略均直接靶向于 ATP 产生,这样将产生最佳且最有效的治疗结果。
标签:
本网所有转载文章系出于传递更多信息之目的,且明确注明来源和作者,不希望被转载的媒体或个人可与我们联系,我们将立即进行删除处理。同时转载内容不代表本站立场。

点赞
0
分享
0
收藏
0